植物免疫系统如何区分朋友和敌人?豆科-根瘤菌共生的启示

辣椒遗传转化(四):筛选培养
2026 年 9 月 2 日
开学季!“转”出你的科研新装备
2026 年 9 月 11 日
植物生活在充满微生物的环境中,进化出两层免疫系统:PTI由细胞表面受体识别微生物保守分子特征(如flg22),启动基础防御;ETI由胞内NLR蛋白识别特异性效应子,激活更强防御。传统认为二者相对独立,近年研究表明密切协同。豆科植物与根瘤菌共生中,宿主既要允许有益根瘤菌入侵,又要防止病原菌侵害,免疫系统需要在防御与接纳间实现精细平衡。
近期发表于aBIOTECH期刊的综述文章“CoordinationofPTIandETIinlegume–rhizobiummutualism”,系统总结了豆科植物如何利用两层免疫系统(PTI和ETI)来调控与根瘤菌的共生。
文章来源:aBIOTECH.2026Mar28;7(2):100042.doi:10.1016/j.abiote.2026.100042
综合来看,豆科植物在与根瘤菌共生过程中,通过三层递进的免疫调控策略实现了共生与防御的平衡。
首先(如图1所示),根瘤菌通过多种手段主动抑制宿主的PTI反应——包括自身flg22表位的变异以逃避识别、Nod因子介导的防御抑制、表面多糖的调节作用,以及SymRK激酶对免疫正调控因子BAK1的抑制——从而为根瘤菌的初始侵染创造一个免疫许可的微环境。
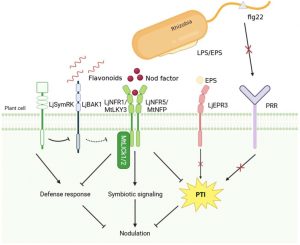
Fig. 1. Role of PTI in rhizobium–legume mutualism.
其次(如图2所示),宿主并不盲目接纳,而是通过ETI途径对根瘤菌进行精准筛选:胞内R蛋白(如Rj2/Rfg1、GmNNL1、Rj4)识别由T3SS分泌的特定效应子(如NopP、NopL),若识别成功则触发防御反应,限制不相容或低效菌株的结瘤,而这种识别特异性甚至可因单氨基酸变异而改变;同时部分效应子(如ErnA)也能绕开经典Nod因子通路,独立激活共生程序,展现了共生建立的多元路径。
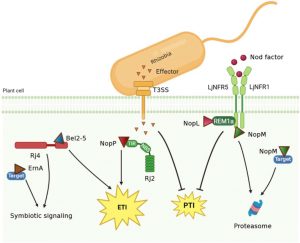
Fig. 2. ETI plays essential roles in the specificity of mutual symbiosis.
此外(如图3所示),PTI与ETI并非孤立运行,而是通过共享的下游信号(如ROS、SA/JA激素)相互交织,效应子还可直接靶向Nod因子受体以增强共生信号;而在结节建立后,宿主依靠NAD1(通过自噬降解免疫蛋白)、DNF2、RSD等结节特异性蛋白持续抑制免疫反应,确保根瘤菌正常分化和固氮功能,一旦这些“刹车”失灵,结瘤固氮效率即显著下降。这三方面共同构成了豆科植物免疫与共生协同调控的完整图景。
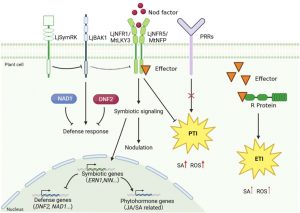
Fig. 3. Model of the role of the interplay of PTI and ETI in rhizobial symbiotic signaling during early legume–rhizobium interactions.
本综述系统揭示了豆科植物通过PTI的免疫抑制创造侵染条件、通过ETI实现共生伙伴精准选择、通过结节特异性蛋白维持免疫-共生动态平衡的完整机制。NAD1、DNF2、RSD及Rj2/Rfg1等基因为改良共生固氮效率提供了明确的基因编辑靶点。高效的大豆、苜蓿等豆科遗传转化体系是推动该领域从基础研究走向应用的关键工具。
青岛吉农基因科技有限公司专注于大豆、小麦、番茄、辣椒、玉米、烟草等作物的遗传转化全套服务,可为您提供从基因克隆、载体构建到稳定转基因植株再生的全流程技术支撑。

产品与服务